Taimi tajutakse tihti kena rohelise tapeedina: arvatakse, et nad on küll silmale ilus vaadata, aga mitte just ülemäära põnevad või tegusad. Ometi on just taimed eriti osavad keskkonnatingimustega kohanema, et sõna otseses mõttes paigal püsides ellu jääda ja järglasi anda.
Pealtnäha tuimades taimedes toimub tegelikult vilgas siseelu, mille paljud seaduspärasused on siiani teadmata. Koolis on õpitud, et taimed valmistavad fotosünteesi käigus süsihappegaasist ja veest suhkruid ning eraldavad hapnikku ja et ilma hapnikuta oleks elu Maal hoopis teistsugune.
Selleks, et süsihappegaas taime pääseks ja fotosüntees toimuda saaks, on maismaataimedel õhulõhed: kahest sulgrakust moodustuvad kontrollitava suurusega poorid, mille avatuse määrab sulgrakkude veesisaldus.
Lisaks süsihappegaasi omastamisele on õhulõhedel oluline funktsioon taimede veevahetuses: nende kaudu toimub vee aurumine taimedest, mis aitab toitaineid mullast lehtedesse liigutada ja lehti jahutada. Õhulõhede kaudu sisenevad taimedesse ka haigustekitajad ja saasteained, näiteks osoon.
Õhulõhede avanemine fotosünteesiks soodsates oludes – valges ja niiskes keskkonnas – ning sulgumine veepuuduse korral või vastusena patogeenidele võimaldabki taimedel muutuvas keskkonnas ellu jääda, kasvada ja järglasi anda.
Õhulõhede arv lehtedes kõigub
Lisaks õhulõhede avatusele mõjutab taimede gaasivahetuspotentsiaali ja haiguskindlust õhulõhede arv lehtedes. Seegi sõltub taime kasvukeskkonnast: varjus arenevatel lehtedel tekib vähem õhulõhesid kui valges keskkonnas. Arvatavasti võimaldab see vähendada veekadu ja haigestumisriski oludes, kus valguse nappus fotosünteesi piirab.
Õhulõhede tihedus – õhulõhede arv taimelehe pinnaühiku kohta – varieerub suurel määral olenevalt liigist ja kasvukeskkonnast. Tihedus kujuneb õhulõhede moodustumise ja rakkude kasvu tulemusena. Kui õhk või muld on kuiv, jääb leherakkude kasv kängu ja moodustunud õhulõhed paiknevad seetõttu tihedamalt.
Enamikul taimedel paiknevad õhulõhed vaid lehe alumisel küljel või siis on neid seal oluliselt rohkem kui lehe ülemisel küljel.
Selleks, et päriselt aru saada, kas õhulõhede tiheduse erinevused on tingitud muutustest lehe arengus või rakkude kasvus, on vaja mõõta õhulõhede indeksit – õhulõhede osakaalu kõigist lehe välimise kihi ehk epidermi rakkudest –, mis on rakkude suurusest sõltumatu tunnus.
Enamikul taimedel paiknevad õhulõhed vaid lehe alumisel küljel või siis on neid seal oluliselt rohkem kui lehe ülemisel küljel. Siiski on olemas hulk liike, kel moodustuvad õhulõhed nii lehe alumisele kui ka ülemisele pinnale. Sellised on näiteks paljud teraviljad, aga ka peamine taimegeneetika mudelorganism harilik müürlook (Arabidopsis thaliana).
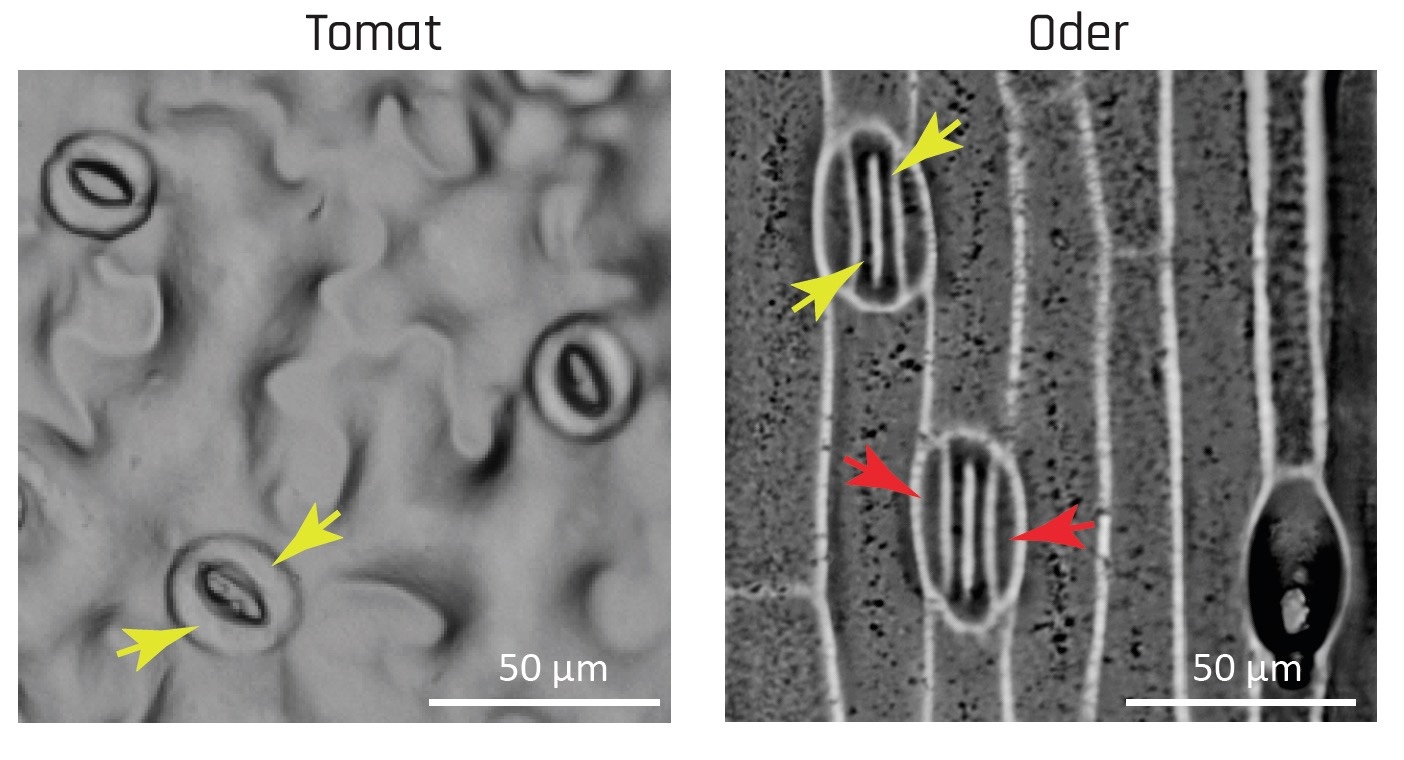
Õhulõhede jaotust lehepindade vahel kirjeldab õhulõhede tiheduste suhe, mis paistab olevat ka põllumajanduslikult oluline tunnus. Meie teadusrühma seni avaldamata andmed näitavad, et nii tomatil kui ka odral andsid suurema õhulõhede tiheduste suhtega sordid suurema saagi. Seega oli teiste sortidega võrreldes rohkemate õhulõhede moodustumine lehe ülaküljele soodne tunnus nii taimedele, kel muidu on ülaküljel vähem õhulõhesid kui alaküljel (tomat), kui ka neile, kel on neid mõlemal lehe küljel sarnane arv (oder).
Igal oma arengumehhanism
Ehkki õhulõhede paiknemine lehe mõlemal küljel ei ole haruldane tunnus, on viimase poolsajandi jooksul keskendutud uuringutes eelkõige lehe alakülje õhulõhedele, mida on peetud peamiseks lehe gaasivahetuse mõjutajaks.
Lisaks on õhulõhede avanemise ja sulgumise uuringutes paljuski kasutatud meetodeid, kus lehe alakülje epiderm eraldatakse taime küljest ja õhulõhede liikumist uuritakse selliselt eraldatud rakukihis valgusmikroskoobi abil. Võimalik, et ülakülje õhulõhed on jäänud tähelepanu alt välja osaliselt ka seetõttu, et lehe ülakülje epidermi on taime küljest väga raske eraldada.
Praeguseks on palju teada selle kohta, milliste signaaliradade ja molekulide vahendusel toimub lehe alakülje õhulõhede areng, avanemine ja sulgumine, kuid väga vähe on teada, mis toimub lehe ülaküljel neis taimedes, kel õhulõhed moodustuvad lehe mõlemale küljele.
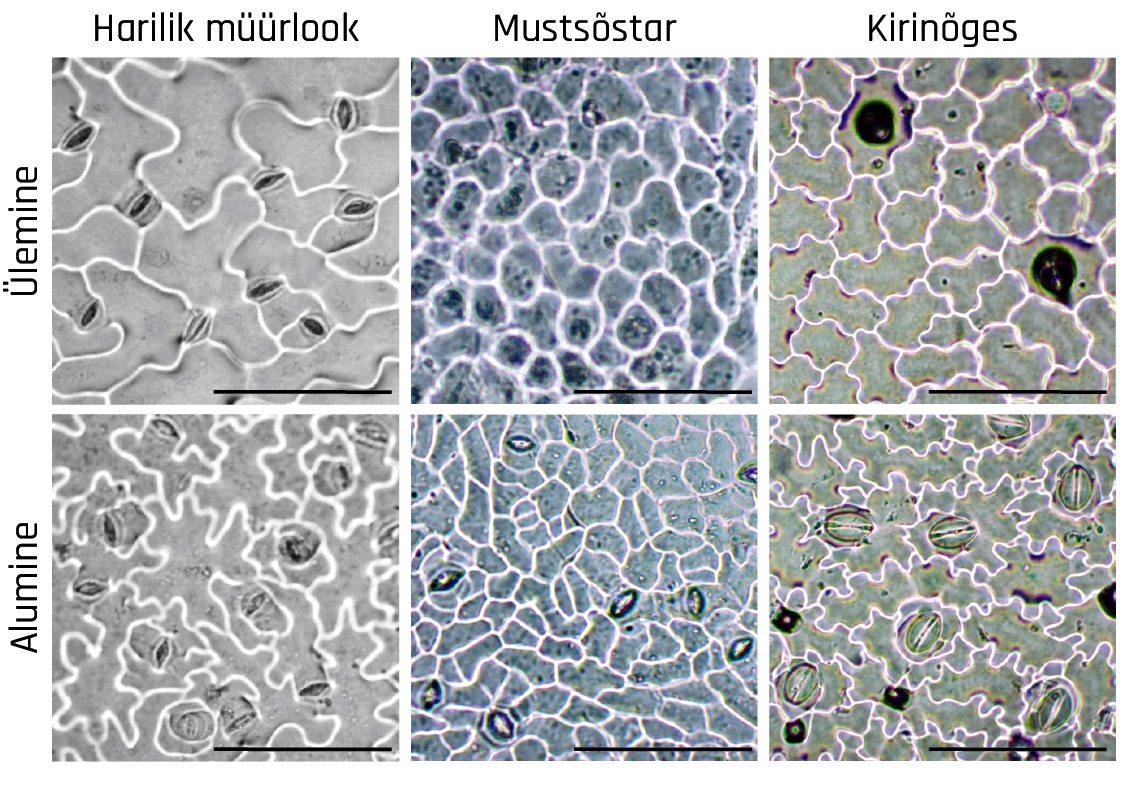
Et mõista, kas lehe ala- ja ülakülje õhulõhede areng kulgeb koordineeritult või teineteisest sõltumatult, uurisime lehe mõlema külje õhulõhede mustreid erinevates hariliku müürlooga mutantides, kel oli häiritud mõne teadaolevalt lehe alakülje õhulõhede moodustumisega seotud geeni toimimine.
Leidsime, et õhulõhede areng lehe ülemisel ja alumisel küljel on osaliselt erinev: mitme geeni funktsiooni häire mõjutas õhulõhede tekkimise mustreid eelkõige lehe alaküljel, kuid nende mõju lehe ülakülje õhulõhede arengule oli väiksem. Eriti märkimisväärne oli geeni TMM roll: selle puudumine põhjustas liigsete õhulõhede tekkimise lehe alaküljel, kuid ei mõjutanud lehe ülakülje õhulõhede arvu, vähendades seega üla- ja alakülje õhulõhede tiheduste suhet.
Kuna õhulõhede tiheduste suhe paistab olevat põllumajanduslikult oluline, loome koostöös Maaelu Teadmuskeskuse teadlastega uute aretustehnikate abil TMM-i mutatsiooniga odrad, et uurida, kas ka neil muutub õhulõhede tiheduse suhe ja kui, siis kuidas see odra kasvu ja saagikust mõjutab.
Salapärased ülakülje õhulõhed
Taimede gaasivahetuse uuringud on näidanud, et liigid, kel on õhulõhed lehe mõlemal küljel, omastavad süsihappegaasi tõhusamalt ja nende õhulõhed reageerivad keskkonnatingimuste muutumisele kiiremini. Seega võiks ju arvata, et õhulõhede moodustumine lehe mõlemale küljele on taimedele kasulik tunnus, mis võiks olla laialt levinud.
Ent nagu eespool öeldud, moodustuvad enamikul taimedel õhulõhed vaid lehe alaküljele, ja see viitab, et ülakülje õhulõhed on taimele millegi poolest kulukad. Seni pole selge, milles lehe ülakülje õhulõhede hind seisneb. Ühe hüpoteesi järgi on need kulukad liigse veekaotuse tõttu, mis on tingitud valgemast, kuivemast ja soojemast keskkonnast lehe ülaküljel.
Maaelu Teadmuskeskuse nisupõldudel tehtud uuringute tulemused on selle hüpoteesiga kooskõlas, sest leidsime neis, et soojadel ja kuivadel katseaastatel andsid suvinisu sordid, millel on suurem lehe ülakülje õhulõhede tihedus, vähem saaki. Teised uuringud aga viitavad, et mõlemale lehe küljele õhulõhesid moodustavad taimeliigid eelistavad kasvada valgetes ja kuivades tingimustes, ja see veekaotuse hüpoteesi ei toeta.
Keeruliste kliimatingimuste jaoks sobivaima õhulõhede paigutusega sordid taluvad paremini stressi ja on saagikamad.
Veel arvatakse, et lehe ülakülje õhulõhede hind võib seisneda suuremas vastuvõtlikkuses haigustekitajatele, kuid on vähe katselisi tõendeid, mis seda hüpoteesi toetaksid. Miks enamikul taimedel lehe ülaküljel õhulõhesid ei ole, on seni vastamata küsimus. Vastuse leidmise teeb keeruliseks see, et liikidevahelistes võrdlustes on palju segavaid faktoreid, mis võivad tulemusi mõjutada, sh lehtede erinev kuju, ehitus ja paigutus valguse suhtes.
Abi oleks uuringutest, kus saaks võrrelda sama liigi taimi, kel on õhulõhed kas ainult lehe alumisel või mõlemal küljel ja erinevad õhulõhede tiheduse suhted. Selliseid taimi peaks olema võimalik geneetiliste meetodite abil luua.
Harilik müürlook on selliseks uuringuks hea mudelorganism, kelle puhul on metoodiliselt kergesti ja kiiresti võimalik luua mutandipopulatsioone ja mõjutada õhulõhede paiknemise mustreid. Loodud taimeliinide abil saab välja selgitada, kuidas tekivad lehe ülakülje õhulõhed, kuidas kujuneb õhulõhede jaotus lehepindade vahel ning milline on lehe ülakülje õhulõhede kasulikkus ja hind taimedele.
Kui teame, missugused geenid ja signaalirajad määravad õhulõhede moodustumise lehe ülaküljele ja nende arvukuse, saame lõpuks sihipäraselt muuta kultuurtaimede õhulõhede paigutust. Nii on võimalik aretada keeruliste kliimatingimuste jaoks sobivaima õhulõhede paigutusega sorte, kes taluvad paremini stressi ja on saagikamad.